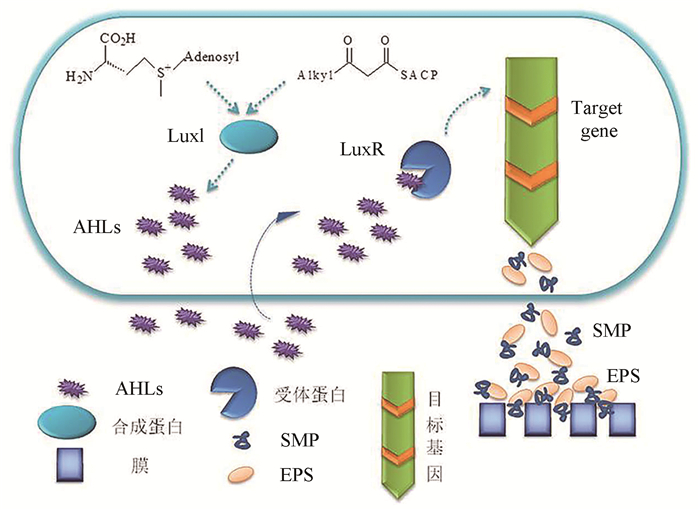
 图 1
革兰氏阴性菌中群体感应调节系统
Figure 1.
Quorum sensing regulating system in Gram negative bacteria
引用本文:
鲁馨, 张海丰, 李剡. 膜生物反应器中N-酰基高丝氨酸内脂分析技术研究进展[J]. 化学通报,
2017, 80(3): 260-265.

Citation: Lu Xin, Zhang Haifeng, Li Yan. Research Progress in the Analysis Technology of AHLs in Membrane Bioreactor[J]. Chemistry, 2017, 80(3): 260-265.
Citation: Lu Xin, Zhang Haifeng, Li Yan. Research Progress in the Analysis Technology of AHLs in Membrane Bioreactor[J]. Chemistry, 2017, 80(3): 260-265.
膜生物反应器中N-酰基高丝氨酸内脂分析技术研究进展
摘要:
膜生物污染一直是膜生物反应器(Membrane bioreactor,MBR)在废水处理工艺中需要解决的一大难题。新近研究表明,基于群体感应的猝灭技术可以作为MBR活性污泥体系中一种有效的膜生物污染防治策略。因而,识别和分析群体感应产生的信号分子是应用群体猝灭技术防治MBR中膜生物污染的关键。本文首先介绍了活性污泥体系中的群体感应机理和N-酰基高丝氨酸内脂(AHLs)类化合物;接着,归纳了近期研究中针对MBR中AHLs定性和定量分析的方法;最后,对MBR中AHLs识别及分析技术的应用前景进行了展望。
-
关键词:
- 膜生物反应器
- / 群体感应
- / N-酰基高丝氨酸内脂
- / 膜污染
English
Research Progress in the Analysis Technology of AHLs in Membrane Bioreactor
Abstract:
Membrane biofouling has still been a major problem in membrane bioreactor (MBR) for wastewater treatment. Recently, the quorum quenching technology based on quorum sensing might been an innovative and effective strategy for controlling membrane biofouling. And thus, the recognition and analysis for the signal molecules would play a key role in the application of quorum quenching in dealing with membrane biofouling, which will provide a better understanding of the mechanism of quorum quenching technology in MBR. This paper clarified the main N-acyl homoserine lactones (AHLs) and summarized analytical methods in terms of qualitative and quantitative perspectives, respectively. The mechanism of quorum sensing and AHLs in activated sludge was introduced in details. Further, the qualitative and quantitative analysis methods of AHLs were summarized, and finally, the applications of recognition and analytical technology with respect to AHLs were proposed in MBR.
-
Key words:
- Membrane bioreactor
- / Quorum sensing
- / N-acyl homoserine lactones
- / Membrane fouling
-
膜生物反应器 (Membrane bioreactor,MBR) 作为一种新兴的水处理回用技术被广泛应用于市政和工业废水的处理中,与传统工艺相比,该工艺具有污泥停留时间长、混合液悬浮固体浓度高、污泥负荷高、占地面积小、出水水质好等优点[1]。然而,膜分离过程产生的生物污染是MBR在应用中最主要的障碍,膜表面生物污染与自发吸附在膜表面上的微生物的生长有密切联系[2]。新近研究表明,MBR运行成本的60%直接与生物污染有关[3],因而,膜生物污染的防治一直是该领域研究的重点。最近,基于群体感应 (Quorum sensing) 的猝灭技术作为有效的膜生物污染防治手段备受关注。研究者发现,群体感应与MBR中膜表面生物污染层的形成有着密切的关系[4],依据群体猝灭 (Quorum quenching) 理论,向MBR中投加N-酰基高丝氨酸内脂 (N-acyl homoserine lactones,AHLs) 猝灭剂或培养群体猝灭菌,可有效减缓MBR中的膜生物污染[5]。
由革兰氏阴性细菌产生的AHLs普遍存在于MBR活性污泥体系中。前期研究表明,AHLs对微生物次生级代谢产物,如胞外聚合物 (Extracellular polymeric substances,EPS) 和溶解性微生物产物 (Soluble microbial products,SMP) 的浓度及组成有重大影响,而EPS与SMP是造成膜生物污染的主要因素[6, 7]。如何识别和分析群体感应产生的AHLs是应用群体猝灭技术防治MBR中膜生物污染的主要限制因素。本文主要介绍了MBR中的群体感应机理及普遍存在的AHLs,归纳了关于AHLs的定性及定量分析方法,并对其进行了评价。通过对MBR中AHLs的定性和定量分析技术的总结,有利于进一步认识群体感应对膜生物污染的影响机制,为群体猝灭技术应用于MBR实际工程提供理论依据。
1 群体感应机理及AHLs识别
大量研究发现,细菌能合成并释放自体诱导物质 (Autoinducer,AI) 作为信号分子,AI可自由穿透细胞膜和细胞壁并在胞外积累,当AI的浓度达到阈值时,与特定受体蛋白的氨基端相结合,诱导微生物中特殊性基因表达,从而调控自身生物行为,如毒性的产生、生物体的发光、生物膜的形成等,即群体感应现象,对细菌群体感应机制进行干扰或破坏,达到抑制群体感应现象的效果,称为群体猝灭[8~10]。AI的种类主要有3类:革兰氏阴性菌分泌的具有不同酰基侧链的N-酰基高丝氨酸内酯;革兰氏阳性菌产生的寡肽 (Autoinducer peptide,AIP),其作为信号分子能感知细菌内自身数量的变化;呋喃硼酸二聚酯,即自体诱导分子-2(Autoinducer-2,AI-2),革兰氏阴性菌和革兰氏阳性菌都能产生[11]。目前革兰阴性菌的群体感应成为研究热点,AHLs是其最重要的信号分子,因此,基于AHLs研究群体感应调节系统较为普遍。
图 1为革兰氏阴性菌中群体感应系统调节机理。产生AHLs的LuxI型合成酶 (自体诱导合成酶)、感测AHLs的同源LuxR型受体 (自体诱导受体蛋白) 和AHL组成群体感应调节系统[12]。LuxI通过使酰基-酰基载体蛋白 (acyl-acyl carrier protein,acyl-ACP) 的酰基侧链与S-腺苷甲硫氨酸 (S-adenosyl-L-methionine,SAM) 上的高半胱氨酸基团相结合,生成具有特异性的酰化高丝氨酸,经一次内酯化最终形成AHLs[13]。细胞外AHLs浓度密度达到阈值时,AHLs与LuxR型受体对应的N-端结合,激活LuxR,使其与DNA结合,表达具有形成生物膜功能的基因[14, 15]。
图 1
革兰氏阴性菌中群体感应调节系统
Figure 1.
Quorum sensing regulating system in Gram negative bacteria
鉴于MBR菌群的多样性,鉴定MBR中所有AHLs的类别还有待进一步深入研究。表 1显示了目前已鉴定出的AHLs分子结构及细菌中群体感应调控行为。AHLs属于脂肪类衍生物中一种小分子水溶性化合物,浓度极低,用一般手段无法检测出来[14],不过,尽管AHLs种类多,微观结构复杂,然而其分子结构中都有一个相同的高丝氨酸内酯 (HSL) 环与一个酰胺链,因此,可从三方面确定其分子结构特征:(1) N-酰基侧链的长短不一样,即酰胺中C原子的个数不同,目前的研究均为4~18个C原子,且一般均为偶数C原子 (奇数的情形只有7个C原子);(2) 3-碳位置上的取代基不同,一般为氢原子、羟基或羰基取代;(3) 饱和度不同,即侧链中有无一个或者有多个不饱和键[15~17]。
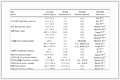 表 1
主要的AHLs及细菌中群体感应调控行为
Table 1.
The main AHLs and QS-controlled behaviors in bacteria
信号分子名称 分子结构式 细菌 功能 C4-HSL 
Aeromonas 生物膜的成熟和吸附[18] C6-HSL 
A. salmonicida C. violacium 酶的产生[18]紫色的产生[19] 3-oxo-C6-HSL 
Vibrio fischer 荧光的产生[20] C8-HSL 
Nitrosomonas europaea 未知[21] 3-oxo-C8-HSL 
P. aeruginosa 影响生物膜的生长[22] C10-HSL 
Nitrosomonas europaea 未知[21] 3-oxo-C10-HSL 
Vibrio anguillarum 毒性的产生[23] 3-oxo-C12-HSL 
P. aeruginosa 毒性的产生[23] 2 AHLs的分析
2.1 MBR中AHLs的定性分析
2.2 MBR中AHLs的定量分析
2.1.2 高效液相色谱 (HPLC)
目前HPLC被广泛用于MBR中AHLs提取物的定性分析[32]。具体提取及分析步骤[33]为:(1) 从未使用的生物膜中提取AHLs,将其放到400mL去离子水中,用反冲洗和声波降解法分离生物膜,悬浮液中的生物膜用100mL乙酸乙酯振荡2h,将有机层从水层中分离,真空蒸发仪干燥,用200μL甲醇溶解残留物;(2) 提取物用HPLC进行分析 (用水/甲醇混合制备梯度流动相溶液,UV检测波长为210nm),将标准AHLs溶解到甲醇中制备成1mg/mL溶液,取20μL溶液加入到980μL含有0.1%甲酸的甲醇/水 (35 :65,体积比) 中,再将标准AHLs混合样25μL、空白组样品与AHLs提取物以0.25mL/min的速率注射,HPLC连接分流收集器,每9min用测试试管收集,负载到指示琼脂板上做生物鉴定。
Kim等[34]用HPLC定性分析不含猝灭剂的提取液,显示有4个主要的吸收峰,其中两个峰的保留时间分别是3.2和11.8 min,通过比较标准AHLs峰,识别出样品里存在C8-HSL、3-oxo-C8-HSL。通过与对照反应器对比发现,含有猝灭剂的提取液中检测不到相应的峰,说明样品中AHLs浓度低于HPLC的检测下限或者不存在AHLs,从而证明了基于群体感应机理的猝灭技术能够有效降低AHLs的浓度。Waheed等[35]在研究MBR中微生物种群动态时,先用根瘤农杆菌A136和紫色杆菌CV026检测主要群体感应细菌的多样性,再用HPLC分析活性污泥中AHLs的类型,观察到保留时间5.6、6.5和10.7 min的峰,分别对应于短链C4-HSL、C6-HSL和中链C8-HSL。
HPLC分析方法可识别多种AHLs,实验结果准确可靠[33],可避免实验产生假阳性结果[34],而且,其实验操作相比TLC-Biosensor方法更容易,预处理过程更简单[35]。
2.1.1 薄层层析与细菌生物感应器相结合 (TLC-Biosensor) 的方法
基于传感菌的选择和TLC的配制方法不同,TLC-Biosensor略有差异,然而,定性分析的原理相同,均利用传感菌对使其敏感的AHLs产生荧光,并根据TLC板上产生荧光点的Rf值 (样品点移动距离与溶剂前沿移动距离的比值) 识别AHLs的类别。目前,文献报道的可作为传感菌用于MBR中AHLs定性分析的细菌有根瘤农杆菌A136[24]、根瘤农杆菌NTL4[25]、紫色杆菌CVO26[26]和大肠杆菌MT102[27]等。
根瘤农杆菌A136(Tiˉ)(pCF218)(pCF372)[28]作为传感菌被广泛用于研究MBR中群体感应对膜生物污染的影响,主要通过TLC-Biosensor定性分析MBR中的AHLs。具体步骤如下:(1) 在线检测全部AHLs:生物测定系统由指示琼脂平板、消毒白色过滤器和样品组成,指示琼脂平板由过夜培养根瘤农杆菌A136和LB琼脂1:9混合配制,再加入观霉素 (0.25%,体积比) 和四环素 (0.05%,体积比),用X-gal (5-溴-4-氯-3-吲哚-β-D-吡喃半乳糖苷) 覆盖,每个样品用消毒白色过滤器 (防止指示琼脂被微生物污染) 在指示琼脂板上画“T”型条,如果样品中含有AHLs,则会产生蓝色荧光[29];(2) 由TLC识别AHLs的类别。将AHLs提取液点样在C18反相TLC板上,用1.5%的农杆菌A136、抗生素和X-gal的LB琼脂覆盖,观察AHLs呈像,对比样品和标准AHLs溶液在TLC色谱图中显示的图谱,通过计算Rf值定性识别样品中AHLs的类别[30]。
Siddiqui等[31]研究群体感应对MBR中膜生物污染防治的影响时,应用了TLC-Biosensor相结合的方法,定性出C6-HSL和C8-HSL,发现群体猝灭通过调控EPS的浓度进而控制膜生物污染。该方法的应用为群体猝灭技术防治膜生物污染提供了理论依据。Oh等[3]将群体猝灭细菌密封在微孔膜中进一步研究群体猝灭对膜生物污染的防治效果,在控制组提取液中成功识别出C6-HSL、C8-HSL和C10-HSL三种AHLs,与控制反应器对比发现,投加红球菌 (群体猝灭菌) 的提取液中AHLs浓度超出TLC-Biosensor生物鉴定检测下限,表明利用群体猝灭菌成功降低了AHLs的浓度。
TLC-Biosensor的应用成功识别出MBR中主要的AHLs,为群体猝灭技术防治膜生物污染的工程化应用提供了进一步的定性依据。然而,应用TLC-Biosensor技术的过程中,诸多因素将干扰检出结果,例如,非AHLs化合物可能干扰报告系统产生假阳性结果,阴性结果也不能排除AHLs的产生。此外,信号分子浓度太低也将限制TLC-Biosensor的检测。
总之,TLC-Biosensor定性分析方法[24~31]具有硬件仪器价格便宜、配制TLC操作简单、定性分析时间短的特点。被选作Biosensor的细菌是基因工程菌,接触AHLs能产生特定荧光,具有较强敏感性,可培养。不同种传感菌对AHLs敏感程度有差异,将两种或多种菌结合应用有望定性出更多类别的AHLs。
2.2.2 色谱-质谱仪联用
通过高效液相色谱-质谱 (HPLC-MS) 联用或超高效液相色谱-质谱 (UPLC-MS) 联用的方法,可定量分析MBR中的AHLs,其优点是检测样品前处理简单且不需要标样,可实现定量及定性分析,是从复杂混合物中识别AHLs的有效手段[44, 45]。
在质谱鉴定中,所有AHLs均有一个m/z 102的内酯环结构特征碎片,且相对分子质量为172+14n[46]。根据AHLs的这些特征,以C6-HSL、3-oxo-C8-HSL为标准样品,建立通过HPLC-MS检测MBR提取液中AHLs浓度的方法,只需要对其做简单的预处理,不需要标样就可以定量测定样品中AHLs的浓度。
Li等[47]采用固相萃取和UPLC结合技术对AHLs进行定量分析,分离在1min之内完成,与传统HPLC法相比分离效率高、速度快,该方法测定时需要优化参数,如梯度的设定、溶剂pH和流速等。Englmann等[48]将UPLC-MS联用技术用于AHLs及其水解产物的快速定量测定。该技术用于跟踪和模拟控制条件下pH对AHLs水解反应的影响。该优化方法成功应用于细菌培养液中AHLs的测定。UPLC与MS耦合技术可提高检测灵敏度,大大降低AHLs的检测下限。
李玖龄等[49]在研究群体感应对活性污泥体系中氨氮去除率的影响时,对9种AHLs的检测结果表明,在0.5~100 μg/L范围内呈现良好的线性关系,检出限为0.01~0.5 μg/L,回收率为62.5%~118.1%,相对标准偏差为2.9%~12.1%,分析时间为6.5min。该方法具有快速、准确和精密等特点,可及时反映活性污泥功能菌群的生长状态和代谢活性。Katebian等[50]研究处于不同培养阶段下的细菌对自身分泌AHLs的影响时,应用UPLC-MS定量分析卡尔斯巴德菌株产生的AHLs,结果显示,在指数增长阶段,菌株提取液中C4-HSL的含量比C6-HSL高,而过夜培养菌株后,悬浮液中两种AHLs的浓度明显降低或者几乎检测不到。该分析方法具有低的检出下限。
利用HPLC-MS联用技术定量分析MBR中的AHLs具有一定的应用价值,该方法可识别AHLs种类多、操作条件简单,通过最佳分辨率优化及结合快速质谱,可达到高灵敏度的检测效果,能够快速、准确和精密地识别并定量分析AHLs。因而,该分析技术从微生物群种的生长和代谢的角度,为研究群体猝灭控制膜生物污染提供了新的途径。
2.2.1 微量滴定
基于荧光强度与AHLs浓度成正比的原理,可以定量确定AHLs浓度[36]。采用不同传感菌,如根瘤农杆菌[37]等,将待测样品滴定到特制的多孔琼脂平板上,产生不同强度的荧光,通过酶标仪读取荧光值,与标准样品的荧光值进行比对,从而可对MBR中AHLs进行定量分析。目前,在MBR中群体感应机制的研究中,根瘤农杆菌A136是应用较广泛的传感菌,其分析过程为:(1) 将95μL根瘤农杆菌A136与5μL样品装载到96孔的微孔板上,在细菌培养器中30℃条件下培养1.5h;(2) 培养结束后,利用β-Glo鉴定系统 (用于定量细胞中β半乳糖苷酶的表达) 观察荧光反应,室温下培养40min;(3) 设置酶标仪吸光度 (OD615) 测量荧光值,使用N-辛酰基-L-高丝氨酸内酯 (C8-HSL,存在活性污泥中主要的AHLs) 作为标准溶液校准曲线,平行试验3次,进行重复性评估[37~40]。
Kim等[41]用聚合膜层包裹群体感应菌控制MBR中膜生物污染,结果发现,微囊里存活的群体感应菌增殖,通过根瘤农杆菌A136和酶标仪的结合定量出C8-HSL的浓度为0.084nmol/min,比初始阶段C8-HSL的浓度 (0.059nmol/min) 高40%。Charlesworth等[42]用含有质粒pJBA132的大肠杆菌MT102负载在反相C18硅胶板上,当外源AHLs存在时,产生绿色荧光蛋白 (Green fluorescent protein,GFP),显示特征性绿色,提高了AHLs识别的灵敏度。用薄层技术结合Andersen改性的96微孔板进行量化测定荧光 (激发波长,485nm;发射波长535nm),通过酶标仪测量培养液的OD600,最终成功定量出C4-HSL、C6-HSL、3-oxo-C6-HSL、C7-HSL、C8-HSL、3-oxo-C8-HSL、C10-HSL、C12-HSL和3-oxo-C12-HSL,检测限分别为1710、0.2、0.009、0.43、4.54、0.012、25.54、113.2和2.97 ng。Soares等[43]应用含有LuxR基因类似物的大肠杆菌作为传感菌,实验中发现所应用的传感菌不仅能探测C-3位置上没有被修饰的AHLs,还能探测链长为4~8个C原子的信号分子,其检测范围为1nmol/L~1mmol/L。
目前微量滴定法能识别定量出9种低浓度AHLs。该方法具有定位准确、灵敏度高、识别AHLs种类多,检测下限低、投入成本低、鉴定效率高、抗外界干扰强、稳定性好等优点。
3 结语
尽管基于群体感应机制的猝灭技术应用于控制膜生物污染已经取得了很大进展,有希望从源头上解决MBR中膜生物污染的问题。然而针对AHLs的识别及分析技术仍需进一步完善和深入,主要体现在以下方面:(1) 尽管目前研究者已经定性出MBR中主要的AHLs,然而基于其结构的复杂性,全面定性出全部AHLs的种类仍有待进一步深入进行,从而为群体猝灭技术提供更为完善的定性依据;(2) 在AHLs定量分析技术中,微量滴定法因其识别AHLs种类多、检测下限低等优点,在该领域应用前景广阔;然而,由于该技术中所应用的传感菌可能会产生假阳性检测结果,因而如何强化传感菌培养、降低假阳性检测结果出现的几率仍有待进一步研究;(3) 目前AHLs的定性定量分析技术主要针对实验室规模的MBR,对于更为复杂的实际MBR工程中所涉及的AHLs识别分析仍未开展,因而全面系统地考察实际复杂工况对AHLs定性定量分析技术的影响,对于该技术的实际应用具有重要的现实意义。
-
-
[1]
张海丰, 吕娜, 孙宝盛.东北电力大学学报, 2014, 34(6):58-61. http://www.cnki.com.cn/Article/CJFDTotal-DBDL201406013.htm
-
[2]
L Malaeb, P Le-Clech, J S Vrouwenvelder et al. Water Res., 2013, 47(15):5447-5463. doi: 10.1016/j.watres.2013.06.033
-
[3]
H Oh, K Yeon, C Yang et al. Environ. Sci. Technol., 2012, 46(9):4877-4884. doi: 10.1021/es204312u
-
[4]
张海丰, 刘洪鹏, 赵贵龙等.东北电力大学学报, 2013, 33(4):1-5. http://www.cnki.com.cn/Article/CJFDTotal-DBDL201304002.htm
-
[5]
J Kim, D Choi, K Yeon et al. Environ. Sci. Technol., 2011, 45(4):1601-1607. doi: 10.1021/es103483j
-
[6]
H Lin, M Zhang, F Wang et al. J. Membr. Sci., 2014, 460(9):110-125.
-
[7]
张海丰, 孙宝盛, 赵新华等.环境科学, 2008, 34(7):82-86.
-
[8]
M F Siddiqui, M Rzechowicz, W Harvey et al. J. Water Proce. Eng., 2015, 7:112-122. doi: 10.1016/j.jwpe.2015.06.003
-
[9]
W Liu, W Cai, A Ma et al. J. Power Sources, 2015, 284:56-59. doi: 10.1016/j.jpowsour.2015.03.007
-
[10]
V C Kalia, P Kumar, S K T Pandian et al. Springer Handb. Mar. Biotechnol., 2015:431-439.
-
[11]
Y Xiong, Y Liu. Microb. Biotechnol., 2010, 86(3):825-837. doi: 10.1007/s00253-010-2463-0
-
[12]
C Solano, M Echeverz, I Lasa. Curr. Opin. Microbiol., 2014, 18(4):96-104.
-
[13]
S Brameyer, H B Bode, R Heermann. Trends Microbiol., 2015, 23(9):521-523. doi: 10.1016/j.tim.2015.07.002
-
[14]
T Praneenararat, T M J Beary, A S Breitbach et al. Bioorg. Med. Chem. Lett., 2011, 21(17):5054-5057. doi: 10.1016/j.bmcl.2011.04.062
-
[15]
J Huang, Y Shi, G Zeng et al. Chemosphere, 2016, 157:137-151. doi: 10.1016/j.chemosphere.2016.05.032
-
[16]
T R I Cataldi, G Bianco, L Palazzo et al. Anal. Biochem., 2007, 361(2):226-235. doi: 10.1016/j.ab.2006.11.037
-
[17]
B Lee, K M Yeon, J Shim et al. Biomacromolecules, 2014, 15(4):1153-1159. doi: 10.1021/bm401595q
-
[18]
S Swift, M J Lynch, L Fish et al. Infect. Immun., 1999, 67(10):5192-5199.
-
[19]
S Y Park, H O Kang, H S Jang et al. Appl. Environ. Microb., 2005, 71(5):2632-2641. doi: 10.1128/AEM.71.5.2632-2641.2005
-
[20]
V Thiel, B Kunze, P Verma et al. ChemBioChem, 2009, 10(11):1861-1868. doi: 10.1002/cbic.200900126
-
[21]
E O Buton, H W Read, M C Pellitteri et al. Appl. Environ. Microb., 2005, 71(8):4906-4909 doi: 10.1128/AEM.71.8.4906-4909.2005
-
[22]
S Xia, L Zhou, Z Zhang et al. J. Environ. Sci., 2012, 24(12):2035-2040. doi: 10.1016/S1001-0742(11)61060-7
-
[23]
T Defoirdt, N Boon, P Bossier et al. Aquaculture, 2004, 240(1-4):69-88. doi: 10.1016/j.aquaculture.2004.06.031
-
[24]
D Jahangir, H S Oh, S R Kim et al. J. Membr. Sci., 2012, 411-412(9):130-136.
-
[25]
J Lv, Y Wang, C Zhong et al. Bioresource Technol., 2014, 152(1):53-58.
-
[26]
L Steindler, V Venturi. FEMS, 2007, 266(1):1-9. doi: 10.1111/j.1574-6968.2006.00501.x
-
[27]
T T Ren, X Y Li, H Q Yu. Bioresource Technol., 2013, 129(2):655-658.
-
[28]
Y Huang, Y Zeng, Z Yu et al. Bioresource Technol., 2013, 148(7):311-316. doi: 10.1016/j.biortech.2013.08.155
-
[29]
T Maqbool, S J Khan, H Waheed et al. J. Membr. Sci., 2015, 483:75-83. doi: 10.1016/j.memsci.2015.02.011
-
[30]
S Y Lim, S Kim, K M Yeon et al. Desalination, 2012, 287(3):209-215.
-
[31]
M F Siddiqui, M Sakinah, L Singh et al. J. Biotechnol., 2012, 161(3):190-197. doi: 10.1016/j.jbiotec.2012.06.029
-
[32]
A Kumari, P Pasini, S Daunert. Anal. Bioanal. Chem., 2008, 391(5):1619-1627. doi: 10.1007/s00216-008-2002-3
-
[33]
S R Kim, H S Oh, S J Jo et al. Environ. Sci. Technnol., 2013, 47(2):836-842. doi: 10.1021/es303995s
-
[34]
K M Yeon, W S Cheong, H S Oh et al. Environ. Sci. Technol., 2009, 43(2):380-385. doi: 10.1021/es8019275
-
[35]
H Waheed, I Hashmi, S J Khan et al. Int. Biodeter. Biodegr., 2015, 113:66-73
-
[36]
K H Nealson, T Platt, J W Hastings. J. Bacterial., 1970, 104(1):313-322.
-
[37]
Q Q Zhan, K P Ye, H H W et al. LWT-Food Sci. Technol., 2014, 57(1):230-235. doi: 10.1016/j.lwt.2013.12.022
-
[38]
N A Weerasekara, K H Choo, C H Lee. Water Res., 2014, 67:1-10. doi: 10.1016/j.watres.2014.08.049
-
[39]
H S Oh, S R Kim, W S Cheong et al. Appl. Microbiol. Biotechnol., 2013, 97(23):10223-10231 doi: 10.1007/s00253-013-4933-7
-
[40]
Y Li, W Hao, J Lv et al. Bioresource Technol., 2014, 159(5):305-310.
-
[41]
S R Kim, K B Lee, J E Kim et al. J. Membr. Sci., 2015, 473:109-117. doi: 10.1016/j.memsci.2014.09.009
-
[42]
J Charlesworth, O Kimyon, M Manefield et al. J. Microb. Meth., 2015, 118:164-167. doi: 10.1016/j.mimet.2015.09.012
-
[43]
J A Soares, B M Ahmer. Curr. Opin. Microbiol., 2011, 14(2):188-193. doi: 10.1016/j.mib.2011.01.006
-
[44]
马晨晨, 李柏林, 欧杰等.分析化学, 2010, 53(10):1428-1432. http://www.cnki.com.cn/Article/CJFDTotal-FXHX201010016.htm
-
[45]
綦国红, 董明盛, 吴胜明等.分析测试学报, 2007, 27(3):417-419. http://d.wanfangdata.com.cn/Periodical/fxcsxb200703030
-
[46]
曹广霞, 徐素平, 彭远义.生物技术通讯, 2010, 21(3):433-437. http://www.cnki.com.cn/Article/CJFDTotal-SWTX201003033.htm
-
[47]
X Li, A Fekete, M Englmann et al. J. Chromatogr. A, 2006, 1134(1-2):186-193. doi: 10.1016/j.chroma.2006.09.047
-
[48]
M Englmann, A Fekete, C Kuttler et al. J. Chromatogr. A, 2007, 1160(1-2):184-193. doi: 10.1016/j.chroma.2007.05.059
-
[49]
李玖龄, 孙凯, 孟佳等.分析化学, 2016, 44(8):1165-1170. http://www.cnki.com.cn/Article/CJFDTotal-FXHX201608002.htm
-
[50]
L Katebian, E Gomez, L Skillman et al. Desalination, 2016, 393:135-143. doi: 10.1016/j.desal.2016.01.013
-
[1]
-

图 1 革兰氏阴性菌中群体感应调节系统
Figure 1 Quorum sensing regulating system in Gram negative bacteria
表 1 主要的AHLs及细菌中群体感应调控行为
Table 1. The main AHLs and QS-controlled behaviors in bacteria
信号分子名称 分子结构式 细菌 功能 C4-HSL Aeromonas 生物膜的成熟和吸附[18] C6-HSL A. salmonicida C. violacium 酶的产生[18]紫色的产生[19] 3-oxo-C6-HSL Vibrio fischer 荧光的产生[20] C8-HSL Nitrosomonas europaea 未知[21] 3-oxo-C8-HSL P. aeruginosa 影响生物膜的生长[22] C10-HSL Nitrosomonas europaea 未知[21] 3-oxo-C10-HSL Vibrio anguillarum 毒性的产生[23] 3-oxo-C12-HSL P. aeruginosa 毒性的产生[23]  下载: 导出CSV
-


 扫一扫看文章
计量
- PDF下载量: 13
- 文章访问数: 2458
- HTML全文浏览量: 409
 下载: